

Cistanche za liječenje upale i bolesti bubrega: Što je uzrok patogene uloge upale u zahvaćenosti bubrega kod cistinopatije?
Mar 13, 2022
Kontakt:joanna.jia@wecistanche.com
Interakcija između galektina-3 i cistinozina otkriva patogenu ulogu upale u zahvaćenosti bubrega cistinozom
Tatjana Lobri1,2 et al
Upalauključen je u patogenezu mnogih poremećaja. Međutim, temeljni mehanizmi često su nepoznati. Ovdje testiramo je licistinoza, protein uključen ucistinoza, kritični je regulator galektina-3, član obitelji proteina koji veže b-galaktozidazu, tijekomupala. Cistinozaje lizosomski poremećaj skladištenja i, unatoč sveprisutnoj izraženosti cistinoze,bubregje primarni organ zahvaćen bolešću.Cistinozautvrđeno je da poboljšava lizosomsku lokalizaciju i razgradnju galektina-3. U Ctns–/–miševi, model mišacistinoza, galektin-3 je prekomjerno izražen ububreg. Odsutnost galektina-3 u cistinotičnim miševima poboljšava patološku funkciju i strukturu bubrega i smanjuje infiltraciju makrofaga/monocita u bubregu Ctns-a–/–Gal3–/–miševa u usporedbi s Ctns–/– miševi. Ovi podaci snažno sugeriraju da galektin-3 posredujeupalauključeni ububregnapredovanje bolesti u cistinozi. Nadalje, otkriveno je da galektin-3 stupa u interakciju s proupalnim citokinom MonocyteChemoattractant Protein-1, koji stimulira regrutiranje monocita/makrofaga, a pokazalo se da je značajno povećan u serumu Ctns–/– miševa a također i bolesnika scistinoza. Stoga naša otkrića naglašavaju novu ulogu cistinoze i interakcije galektina-3 u upali i daju dodatno mehaničko objašnjenje zabubregbolest cistinoze. To može dovesti do odgode identifikacije novih ciljeva lijekovacistinozanapredovanje.
KLJUČNE RIJEČI:kronična bolest bubrega; cistinoza; galektin-3;upala; protein kemoatraktanta monocita–1

cistanche može liječiti kroničnu bolest bubrega i cistinozu
Glavni uzrok upale je taj što dušikov oksid može dovesti do stvaranja upalnih stanica.Cistanchevrijedan je kineski biljni lijek. Njegovi aktivni sastojci mogu inhibirati izlučivanje dušikovog oksida i igrati ulogu u prevenciji i liječenju upala i bolesti bubrega.
Prijevodna izjava
Unatoč liječenju, pacijenti još uvijek napreduju do završnog stadija zatajenja bubrega. U ovom smo istraživanju pokazali da odsutnostcistinozarezultira oslabljenom lizosomalnom razgradnjom galektina-3 (Gal-3), što dovodi doupalai napredovanjekronična bolest bubregaucistinoza. Ova otkrića otvaraju nove poglede na potencijalne terapijske ciljeve koji bi mogli ograničiti ili odgoditi degeneraciju bubrega u bolesnika scistinoza. Kao takvi, protuupalni lijekovi i inhibitori Gal-3 kao što su nesteroidni protuupalni lijekovi ili indometacin mogu poboljšati bubrežnu patogenezu kod cistinoze.
Upalaje normalan akutni odgovor organizma na ozljedu ili infekciju,1ali kroničnoupalapovezana je s oštećenjem tkiva. U slučaju kroničnih bolesti, poput dijabetesa, oštećena tkiva aktiviraju imunološki sustav, što dovodi do kontinuiranog upalnog odgovora i, na kraju, degeneracije tkiva.2 Citokini su ključni modulatoriupalai sposobni su aktivirati ili razriješitiupalaproces.3 U bolesnika skronična bolest bubrega(CKD), povišena koncentracija citokina u plazmi (interleukin [IL]-6 i faktor nekroze tumora-a) iupalamarkeri (C-reaktivni protein, IL-6, hijaluronan i neopterin) povezani su s napredovanjem do završnog stadija bubrežne bolesti.4 Razumijevanje specifičnih medijatora koji pokreću upalne reakcije olakšava otkrivanje odgovarajućih ciljeva lijekova za sprječavanje degenerativnih oštećenja .
Cistinozaje autosomno-recesivna metabolička bolest koja pripada obitelji lizosomskih poremećaja skladištenja i karakterizirana je nakupljanjem cistina u svim organima.5 Gen defektan ucistinoza, CTNS, kodira lizosomalni kotransporter cistina/protona, cistinoza.6,7 Iako je CTNS sveprisutno izražen,bubregje prvi organ zahvaćen kod osoba scistinoza. Pacijenti se u prvoj godini života obično javljaju s Fanconijevim sindromom, kojeg karakteriziraju teški poremećaji tekućine i elektrolita, slab rast i rahitis.8Nakon toga se razvija kronična bubrežna bolest koja napreduje do završne faze bubrežne bolesti i zahtijevabubregtransplantacija. Nakupljanje cistina u svim tkivima na kraju dovodi do višeorganske disfunkcije; pacijenti doživljavaju fotofobiju i sljepoću, hipotireozu, hipogonadizam, dijabetes, miopatiju i pogoršanje središnjeg živčanog sustava.9 U pozadini C57BL/6, nokautirani model miša (Ctns–/–) 10 replicira fenotip bubrega pacijenata s cistinozom,11 kao i taloženje cistinskih kristala u rožnici12i disfunkcija štitnjače.13
U ovoj studiji otkrivamo novu ulogu zacistinozauupalakroz interakciju s Gal-3. Gal-3 je član obitelji lektina i proteina koji veže b-galaktozid 21 te je uključen u više bioloških funkcija, uključujućiupala.22U kontekstububregbolesti, pokazalo se da inhibicija Gal-3 smanjuje ekspresiju proupalnog markera i bubrežnu fibrozu te sprječava pad brzine glomerularne filtracije u modelima hiperaldosteronizma, hipertenzije ili pretilosti.23–26Ovdje pružamo dokaze da, ucistinoza, odsutnostcistinozadovodi do prekomjerne ekspresije Gal-3 ububrega, pojačavajući infiltraciju makrofaga i napredovanje CKD-a. Osim toga, identificirali smo monocitni kemoatraktantni protein–1 (MCP-1) kao potencijalnog posrednika, otkrivajući nove mete gena za terapiju lijekovima. REZULTATI Gal-3 stupa u interakciju s cistinozom putem svoje domene prepoznavanja ugljikohidrata Kako bi se identificirala specifična interakcija partneri koji koriste kvantitativnu masenu spektrometriju, Madin-Darby pasbubreg(MDCK) stanice transducirane su lentivirusnim konstruktom kako bi se stabilno eksprimirao fuzijski protein cistinoze i zelenog FL fluorescentnog proteina (GFP). Uz prethodno objavljenih 9 podjedinica vakuolnog tipa Hþ adenozin trifosfataze,19Gal-3 je identificiran kao jedan od proteina u interakciji scistinoza(Slika 1a). Ova interakcija dodatno je potvrđena ko-imunoprecipitacijom nakon koje je uslijedio Western blot (Slika 1b i c). Osim toga, pokazali smo da je interakcija između Gal-3 icistinozaposredovana Gal-3 domenom za prepoznavanje ugljikohidrata (CRD) lokaliziranom na C-terminalnom repu proteina. Interakciju je inhibirao tiodigalaktozid, snažan inhibitor interakcija galektina i ugljikohidrata (Slika 1d). Kao i svi galektini, Gal-3 ima afinitet za glikozilirane proteine,21 pa je vjerojatno da se interakcija s Gal-3 događa preko cistinoze glikoziliranog dijela koji se nalazi u intralizosomskom N-terminalnom repu proteina.27
Cistinozin poboljšava lokalizaciju i razgradnju lizosoma Gal-3
Kako bi se potvrdila potencijalna lizosomska lokalizacija Gal-3 u interakciji scistinoza, pokazali smo da je Gal-3, poput katepsina D (intralizosomska proteaza), zaštićen od probave proteinazom K, dok su oba proteina probavljena kada su lizosomi permeabilizirani s Tritonom X- 100 (Slika 2a i dopuna Slika S1). Slični podaci dobiveni su u lizosomima izoliranima iz mišje jetre, potvrđujući lizosomsku lokalizaciju Gal-3 in vivo (Slika 2b i c). Zbog nepostojanja pouzdanog protutijela za otkrivanjecistinoza, provedeno je imunološko bojenjecistinoza-GFP–ekspresija MDCK stanične linije s anti-Gal{1}} antitijelom. Potvrđeno je prisustvo Gal-3 u lumenu lizosoma, dok su cistinoza-GFP i Lamp-2 (lizosomalni transmembranski protein) pronađeni samo na membrani vezikula (Slika 2d).
Istražiti je licistinozinbio uključen u promet Gal-3, analizirali smo dinamiku obacistinozai Gal-3–pozitivne vezikule korištenjem dvobojne fluorescentne FL mikroskopije totalne unutarnje refleksije živih stanica u mišjim embrionalnim fibroblastima (MEF) iz divljeg tipa (WT) i Ctns–/–miševi koji eksprimiraju i CTNS-DsRed i Gal-3–GFP. Naša analiza je to potvrdilacistinozai Gal-3 podvrgavaju se pravoj kolokalizaciji u Ctns–/– MEF-ovima što je potvrđeno sličnom prostorno-vremenskom distribucijom ovih molekula u zoni fluorescentne mikroskopije FL s potpunom unutarnjom refleksijom (Slika 2e). Podaci u WT MEF-ovima bili su slični (podaci nisu prikazani). Štoviše, kada su analizirani MEF-ovi transficirani samo s Gal- 3–GFP, Gal-3–GFP je pronađen u citoplazmi i nije primijećena posebna vezikularna struktura, suprotno kotransfekciji s CTNS-DsRed ( podaci nisu prikazani).

Ovi su podaci potvrđeni u stanicama 293T, u kojima je primijećen snažan GFP signal u citoplazmi u stanicama koje izražavaju samo Gal-3–GFP, dok u stanicama koje izražavaju i Gal-3–GFP icistinozin-DsRed, Gal-3–GFP uglavnom je bio lokaliziran unutar lizosoma koji eksprimiraju cistinozu-DsRed (Slika 3a). Štoviše, kvantifikacija ekspresije Gal-3 proteina u stanicama transficiranim samo Gal-3–GFP ili Gal- 3–GFP i CTNS-DsRed, i Gal-3–GFP i DsRed kao kontrola, pokazalo je značajno manje Gal-3–GFP proteina u stanicama kotransficiranim s CTNS-DsRed u usporedbi sa stanicama transficiranim samo Gal-3–GFP ili kotransficiranim s DsRed (Slika 3b). Sve u svemu, ovi rezultati sugeriraju dacistinozinpojačava lizosomsku lokalizaciju i razgradnju Gal-3. Pokazalo se da je cistinozin uključen u CMA.28 Protein toplinskog šoka od 70 kDa (Hsc70) sudjeluje u CMA pomažući odvijanje i translokaciju supstratnih proteina kroz membranu u lumen lizosoma na način ovisan o LAMP2A.29,30 Budući da Gal{ Predloženo je da se {8}} razgradi pomoću CMA,31 istražili smo lokalizaciju Gal-3 u odnosu na Hsc70 u cistinotičnim MEF-ovima. Analiza konfokalne mikroskopije potvrdila je kolokalizaciju Gal-3–GFP na Hsc70- pozitivnim strukturama i u WT (podaci nisu prikazani) i u Ctns–/–stanicama (Slika 3c), podržavajući kotransport Gal-3 s Hsc70 i sugerirajući da je lizosomska internalizacija, ali ne i prepoznavanje Gal-3 od strane pratioca, neispravna ucistinoza.
Gal-3 je uključen u upalu bubrega kod Ctns-a–/–miševi
Proučiti ulogu Gal-3 ucistinozain vivo, generirali smo dvostruki knockout model miša koji ima nedostatak obacistinozini Gal-3 (Ctns–/–djevojka-3–/–miševi). WT, Ctns–/–i Gal-3–/–miševi su korišteni kao kontrolni subjekti. U C57BL/6 Ctns–/–miševa, bubrežne anomalije pojavljuju se u dobi od oko 10 mjeseci.11 Stoga su istraživanja provedena u dobi od 8 do 9 mjeseci, kadabubreganomalije se počinju otkrivati, a sa 12 do 15 mjeseci kada anomalije bubrega napreduju. Budući da je utvrđeno da je sadržaj cistina različit u muškim i ženskim Ctns–/– bubrega, analizirani su zasebno. Ako sadržaj cistina raste s godinama u oba genotipa, nije uočena značajna razlika u muškim i ženskim bubrezima između Ctns–/– Gal-3–/– miševa i Ctns–/– miševi u dobi od 8 do 9 mjeseci i 12 do 15 mjeseci (Slika 4a).
Bubrežna funkcija procijenjena je u serumu i urinu i nije uočena značajna razlika između WT i Ctns–/–miševi u dobi od 8 do 9 mjeseci (podaci nisu prikazani), ali u dobi od 12 do 15 mjeseci, Ctns–/–miševi su pokazali značajno više razine kreatinina i uree u serumu u usporedbi s WT miševima. Zanimljivo, Ctns–/–djevojka-3–/–miševi su pokazali poboljšanu funkciju bubrega u usporedbi s Ctns–/–miševi u dobi od 12 do 15 mjeseci, s nižim serumskim kreatininom (P < 0.05) i ureom (P <0,05; Tablica 1).
Histološke studije miševa starih 8- do 9- mjeseci i 12- do 15- mjesecibubregrezovi su otkrili prisutnost ozbiljnih anomalija u Ctns–/– bubrega, uključujući tubularnu atrofiju, uvučene glomerule i mononuklearne infiltrate. Slijepa analiza presjeka bubrega rangirala je opseg kortikalnog oštećenja od 1 (očuvana struktura tkiva) do 6. Prosječna ocjena za Ctns–/–miševa bilo je 2.64 - 0.36 u dobi od 9 mjeseci (n=7) i 4,12 0.37 u dobi od 12 do 15 mjeseci (n=16). U bubrezima Ctns–/–djevojka-3–/–miševa u istoj dobi, te su anomalije bile znatno manje opsežne: 1.62 - 0.11 u 9 mjeseci (n=21; P < 0.05,="" mann-whitney="" t-="" test)="" i="" 3.04="" -="" 0.22="" u="" dobi="" od="" 12="" do="" 15="" mjeseci="" (n="33;" p="">< 0,05,="" mann-whitneyev="" t-test)="" (slika="" 4b="" i="" dodatna="" slika="" s2).="" štoviše,="" postotak="" tubularne="" atrofije="" dodijeljen="" je="" svakom="" tkivu,="" a="" prosjek="" za="">–/–miševi i Ctns–/–djevojka-3–/–kod miševa bilo je 66 posto odnosno 42 posto u dobi od 12 do 15 mjeseci (P=0.01). Nadalje, upečatljiva razlika između Ctns–/–i Ctns–/– djevojka-3–/– bubregsekcijama bila je prisutnost nekoliko mononuklearnih infiltrata u Ctns-u–/–djevojka-3–/–dijelovima, dok su teški infiltrati dosljedno uočeni u Ctns–/– bubreg(Slika 4b).

Karakterizirali smo mononuklearne infiltrate uočene histološkim pregledom u Ctns-a starih 8- do 9- mjeseci–/– bubregakao makrofagi/monociti zajedničkim imunobojanjem s CD68 i CD45 i s CD68 i glavnom histokompatibilnom klasom II (dodatna slika S3), ali ne s CD68 i CD163, što sugerira da ti makrofagi imaju proupalni profil sličan M1-.32 ,33 Kvantifikacija CD68- pozitivnih stanica otkrila je znatno manje makrofaga/monocita u WT, Gal-3–/–i Ctns–/–djevojka-3–/– bubregau usporedbi s Ctns–/– bubrega(Slika 4c), potvrđujući histološke podatke (Slika 4b).

Sve u svemu, ovi nalazi sugeriraju da je Gal-3 uključen u regrutiranje makrofaga/monocita u cistinoticimabubregai da njegova odsutnost poboljšava bubrežnu bolest u Ctns–/–miševi. Stoga sugerira daupalaje odgovoran, barem djelomično, za propadanje bubrega kod Ctns–/– miševi.
Bubrezi s nedostatkom Ctns-a pokazuju prekomjernu ekspresiju Gal-3
Koristeći Western blot analizu, otkrili smo da je ekspresija Gal-3 značajno povećanabubregaod 12-mjesečnih Ctns–/–miševa u usporedbi s WT miševima (Slika 5a i b). Istražiti je li ova povećana ekspresija Gal-3 specifična za Ctns–/– bubrega, kvantificirali smo ekspresiju Gal-3 na razini transkripta i proteina ububregaod miševa s CKD izazvanom standardnom subtotalnom 2-operacijom nefrektomije i od životinja koje su podvrgnute lažnoj operaciji. WT i Ctns–/–miševi su korišteni kao kontrolni subjekti. Transkripti Gal-3 bili su značajno povećani u Ctns–/– i lažnim bubrezima, ali znatno povećani u CKDbubregau usporedbi s WT miševima (Slika 5c). Nasuprot tome, na razini proteina, Gal-3 je otkriven samo u Ctns–/–bubrege, što snažno sugerira da samo Ctns–/–bubrezi nisu mogli razgraditi protein Gal-3 (Slika 5d). Imunofluorescentno bojenje Gal-3 u murinibubregnakon 8 do 9 mjeseci također je pokazao prekomjernu ekspresiju Gal-3 u Ctns-u–/– bubregau usporedbi s WT-ombubrega(Slika 5e). Štoviše, Gal-3 su eksprimirali CD68þ makrofagi, kao i bubrežne stanice u Ctns–/– bubregau dobi od 8 do 9 mjeseci (dodatna slika S4). Sve u svemu, ovi su podaci u skladu sa smanjenom degradacijom Gal-3 u odsutnosticistinozakao što je pokazano in vitro (Slika 3a i b), što dovodi do nakupljanja proteina Gal-3 u Ctns-u–/– bubrega.
Odsutnost cistinozina dovodi do povećanog serumskog MCP-1 preko regulacije Gal-3
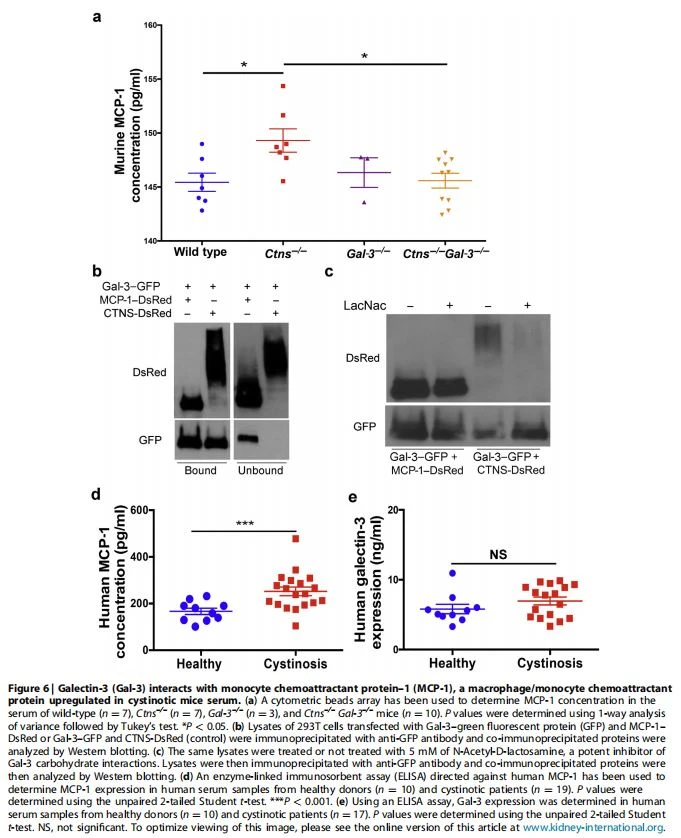
Gal-3 reguliraupalakroz različite mehanizme.34 Dakle, da bi se dobio daljnji uvid u mehanizam ucistinoza, istraživali smo ekspresiju različitih proupalnih ili protuupalnih citokina u serumu 12- do 15-mjesečnih WT, Ctns–/–, Gal-3–/–i Ctns–/–djevojka- 3–/–miševi. Šest razina citokina izmjereno je nizom mišjih citometrijskih kuglica, MCP-1, interferonom-g, faktorom nekroze tumora i IL-10, IL-6 i IL-12p70. Samo je ekspresija MCP-1 značajno povećana u serumu Ctns–/– miševa u usporedbi s WT i Gal-3–/– miševima, a također i s Ctns–/–djevojka-3–/–miševa, čije su razine MCP-1 u serumu bile usporedive s WT miševima (Slika 6a). MCP-1 proizvode različiti tipovi stanica, a glavni izvor MCP-1 su makrofagi i monociti,35 i djeluje kao kemoatraktant za monocite i makrofage regulirajući njihovu migraciju i infiltraciju. Nasuprot tome, u istoj dobi, utvrđeno je da je ekspresija Gal-3 bila slična u serumu Ctns–/– miševa (44,33 9,81 ng/ml; n=5) i WT miševa (40.{{12} }.41 ng/ml; n=7).
Odnos između Gal-3 i MCP-1 dodatno je istražen ko-imunoprecipitacijom pomoću Gal-3–GFP i MCP-1–DsRed– ili Gal-3– GFP i CTNS-DsRed– (kao pozitivna kontrola) ekspresiraju 293T stanice. Uočena je interakcija između Gal-3 i MCP-1 (Slika 6b), što ukazuje na izravnu indukciju MCP-1 od strane Gal-3. Inkubacija s N-acetil-D-laktozaminom (LacNAc), inhibitorom Gal-3 CRD, pokazala je da, za razliku odcistinozininterakcije, CRD nije uključen u interakciju između Gal-3 i MCP-1 (Slika 6c).
Kako bismo procijenili je li ovo otkriće relevantno za ljude, izmjerili smo razine Gal-3 i MCP-1 u pacijenata scistinozakoji nisu bili podvrgnuti imunosupresivnoj terapiji ili uzimali protuupalne lijekove. Iako je utvrđeno da je razina Gal-3 blago povišena u serumu bolesnika s cistinozom u usporedbi sa zdravim darivateljima, razlika nije bila značajna (Slika 6e), što potvrđuje naše rezultate dobivene u Ctns–/–miševi. Samo su 2 bolesnika imala visoku razinu Gal-3 (25,34 i 39,54 ng/ml); smatrani su ekstremima i stoga nisu uključeni u sliku 6e. Nasuprot tome, upotrebom enzimski vezanog imunološkog testa usmjerenog na ljudski MCP-1 (Slika 6d), utvrđeno je da su serumske razine MCP-1 značajno povećane u bolesnika scistinoza(252.1 - 18.4 pg/ml; n=19; dobni raspon 1-23 godine) unatoč liječenju cisteaminom u usporedbi sa zdravim kontrolnim subjektima (166.9 -13.5 pg/ml; n=1). 0; dobni raspon 8–63 godine) (P < 0,001).="" nije="" pronađena="" korelacija="" između="" dobi="" i="" razine="" mcp-="" 1="" u="" oba="" bolesnika="">cistinozai zdravi darivatelji (podaci nisu prikazani).

CistancheimaprotuupalnoSvojstva
RASPRAVA
Unatoč činjenici da se cistin nakuplja u svim tkivima u bolesnika zahvaćenih scistinoza, bubrezi su organi koji su najosjetljiviji na oštećenja. Stoga vjerujemo da nakupljanje cistina nije isključivo odgovorno za degeneraciju bubrega. Ovdje opisujemo novu ulogu zacistinozinu regulacijiupalauključeni u napredovanje kronične bubrežne bolesticistinoza. Ova studija može objasniti zašto pacijenti evoluiraju do krajnjeg stadija zatajenja bubrega unatoč podvrgavanju terapiji cisteaminom.
Studija molekularnih partnera cistinoze otkrila je izravnu interakciju s Gal-3, koju mogu inhibirati inhibitori Gal-3 CRD. Nedavne studije pokazale su da Gal-3 može stupiti u interakciju s glikanima koji se nalaze u lumenu lizosoma nakon oštećenja lizosoma kao što je nakupljanje kristala.36 U našem istraživanju, interakcija između Gal-3 icistinozinproučavan je u zdravim stanicama koje izražavajucistinozini, stoga, ne nakupljanje cisteina ili kristala cistina. Osim toga, prekomjerna ekspresija i Gal-3 i cistinozina u zdravim stanicama modificirala je substaničnu lokalizaciju Gal-3, koja je zatim lokalizirana na lizosome, u usporedbi s prekomjernom ekspresijom samo Gal-3, što bio smješten u citoplazmi. Ovi rezultati snažno sugeriraju da se interakcija između Gal-3 i cistinozina događa neovisno o lizosomskom oštećenju i da je cistinozin aktivno odgovoran za Gal-3 lizosomsku lokalizaciju. Prethodno se pokazalo da se Gal-3 razgrađuje proteolizom ovisnom o lizosomu u odsutnosti Abl i Arg, 2 tirozin kinaze.31
Osim toga, to smo i pokazalicistinozai Gal-3 zajedno se lokaliziraju u dinamičkim vezikularnim strukturama i zajedno se mobiliziraju na prostorno-vremenski način.Cistinozinranije je povezivan s mehanizmima trgovine lizosomskim LAMP2A, jedinim poznatim CMA receptorom, koji je pogrešno lokaliziran ucistinoza.28Prethodno se pokazalo da razgradnju Gal-3 posreduje CMA.31Konfokalna mikroskopska analiza potvrdila je kolokalizaciju Gal-3 u Hsc70-pozitivnim strukturama u oba Ctns-a–/– i WT stanice, podupirući kotransport Gal-3 s Hsc70 za prezentaciju na lizosomu i razgradnju pomoću CMA jer Hsc70 pomaže translokaciju supstratnih proteina preko membrane u lumen lizosoma.29,30Moguća interpretacija naših rezultata je sljedećacistinozinregulira trgovinu i isporuku Gal-3 u CMA-aktivne lizosome radi razgradnje.
Ovaj roman put odcistinozinlokalizacija i razgradnja lizosoma ovisna o Gal-3 podržana je in vivo budući da miševi s nedostatkom Ctns-a pokazuju prekomjernu ekspresiju Gal-3 unutarbubreg. Štoviše, dok je povećana Gal-3 mRNA bila ograničena u Ctns–/–bubrega u usporedbi s drugim modelom CKD, velika količina Gal-3 proteina otkrivena je samo u Ctns–/– bubrega. Ovi podaci snažno podupiru zaključak dacistinozinuključen je u razgradnju Gal-3 proteina, koji može kontrolirati prekomjernu ekspresiju Gal-3 mRNA u stanjima stresa kao što je CKD.
Gal-3 ima nekoliko bioloških uloga, uključujući uloge u akutnoj i kroničnojupalaprivlačenjem monocita i makrofaga.37,38U Ctns–/– miševa, uočili smo teške mononuklearne infiltrate uglavnom ububregkao što je prethodno opisano,11,39koji su okarakterizirani kao monociti/makrofagi. Nasuprot tome, bubrezi iz dvostrukog nokauta Ctns–/–djevojka-3–/–miševi su pokazali vrlo malo infiltrata monocita/makrofaga, što snažno sugerira da je Gal-3 uključen uupalau bubrezima Ctns–/–miševi. U kontekstu ponavljajuće ozljede tkiva, Gal-3 može izazvati prijelaz u kroničnuupalai fibroza.34U skladu s ovim nalazima, naši podaci pokazuju uključenost Gal-3 u progresiju CKD-a ucistinoza. Doista, dvostruki nokaut Ctns–/– djevojka-3–/–miševi su se bolje pokazalibubregfunkciju i strukturu u usporedbi s Ctns–/–miševi. Slično, miševi s nedostatkom Gal-3 pokazuju manju bubrežnu fibrozu ububregu usporedbi s WT miševima nakon jednostrane opstrukcije uretera,40 i Gal-3 nokaut miševi podvrgnuti ishemijsko-reperfuzijskoj ozljedi imali su bolju funkciju bubrega u usporedbi s WT miševima podvrgnutim ishemijsko-reperfuzijskoj ozljedi.41
Iako je pronađena korelacija između razina Gal-3 u plazmi i razvoja CKD-a,42 nije primijećena razlika u ekspresiji Gal-3 u serumu miševa i ljudi pogođenihcistinozai zdravi kontrolni subjekti. Mjerenjem različitih razina citokina u serumu, pronašli smo značajan porast MCP-1 u Ctns-u–/–miševi, dok Ctns–/–djevojka-3–/–miševi su imali razine usporedive s onima WT miševa. MCP-1 je citokin koji se može osloboditi u serumu i formira gradijent za privlačenje monocita i makrofaga na mjesto ozljede.35 Povećanje MCP-1 u serumima Ctns–/–miševa u usporedbi s Ctns–/–djevojka-3–/–miševa je bila neovisna o nakupljanju cistina jerbubregsadržaj cistina bio je sličan u oba genotipa. Nadalje, unatoč liječenju cisteaminom koje je omogućilo izlazak cistina iz lizosoma, MCP-1 je značajno povećan u serumima pacijenata scistinozau usporedbi sa zdravim darivateljima. Ovi podaci snažno sugeriraju da odsutnostcistinozin, a ne nakupljanje cistina, odgovoran je za porast MCP-1 u serumu. Osim toga, pokazali smo izravnu interakciju između Gal-3 i MCP-1, koju su nedavno predložili Gordon-Alonso et al.43 ali nije dalje proučavana. Mehanizam Gal-3-posredovane MCP-1 aktivacije nije proučavan ovdje. Hipoteza je prisutnost signalnog peptida u ljudskom MCP-1, koji se može cijepati kako bi se pojačalo njegovo izlučivanje.44 Štoviše, plazmin može cijepati C-kraj MCP-1, što povećava njegov kemoatraktant Nadalje, u korelaciji s našim podacima, inhibicija MCP-1 u mišjem modelu dijabetičke nefropatije spriječila je infiltraciju bubrežnih makrofaga i poboljšala funkciju bubrega.46,47 Ucistinoza, naši podaci snažno sugeriraju da odsutnostcistinozindovodi do povećanja Gal-3, što aktivira MCP-1 mobilizaciju krvi, poboljšavajući bubrežnuupalai napredovanjekronična bolest bubrega.
Ova otkrića otvaraju nove poglede na potencijalne terapijske ciljeve koji bi mogli ograničiti ili odgoditi degeneraciju bubrega u bolesnika scistinoza. Doista, otkriveno je da nesteroidni protuupalni lijekovi poput aspirina i indometacina inhibiraju ekspresiju Gal-3 inhibiranjem njegove transkripcije.48 Indometacin se zapravo koristi za regulaciju poliurije i polidipsije ucistinoza,49 i nedavna studija na 307 europskih pacijenata s cistinozom pokazala je poboljšani bubrežni ishod u bolesnika liječenih indometacinom.50 U svjetlu naše studije, uporaba indometacina ili nesteroidnih protuupalnih lijekova zacistinozapacijenata se može ponovno razmotriti.

METODE
Pokusi na životinjama
C57BL/6 Ctns–/–Antignac (Inserm U1163, Pariz, Francuska). C57BL/6 galektin-3 nula (Gal-3–/–) miševe osigurali su dr. Fu-Tong Liu (Sveučilište Kalifornija, Davis) i dr. Jerrold M. Olefsky (Sveučilište Kalifornija, San Diego). Strategija uzgoja za stvaranje WT, Ctns–/–, Gal-3–/–, Ctns–/– i Gal- 3–/–miševa je opisano u Dopunskim metodama.
Stanične linije
nered je nastao iz biopsija kože novorođenčadi WT i Ctns–/–miševi. MEF, 293T i MDCK stanične linije tipa II (ATCC, Manassas, VA) uzgajane su u Dulbecco modificiranom Eagle mediju koji sadrži 10 posto fetalnog telećeg seruma ili fetalnog goveđeg seruma, 100 jedinica/ml penicilina, 0,1 mg/ml streptomicina i 2 mM L-glutamina.
Analiza koimunoprecipitacije i masene spektrometrije
Za proučavanje interakcija protein-protein, MDCK stanice su transducirane korištenjem lentivirusne pRRL.SIN.cPPT.PGK/WPRE vektorske okosnice za stabilnu ekspresijucistinozin-GFP.51Koimunoprecipitacija je izvedena kako je opisano u Dopunskim metodama. Koimunoprecipitirani proteini razdvojeni su elektroforezom na natrijevom dodecil sulfatu i poliakrilamidnom gelu (SDS-PAGE) i analizirani spektrometrijom mase, LTQ Orbitrap kao što je već opisano.19
293T stanice koje eksprimiraju Gal-3–GFP i MCP-1–DsRed ili Gal-3–GFP i CTNS-DsRed korištene su za koimunoprecipitaciju kako je opisano u Dopunskim metodama. Ko-imunoprecipitirani proteini razdvojeni su pomoću SDS-PAGE, a Gal-3-vezujući MCP-1 otkriven je korištenjem anti-DsRed protutijela (Clontech Laboratories, Mountain View, CA).
Substanično frakcioniranje
Osam jetara dobiveno je od C57BL/6 miševa i pripremljeno kao što je prethodno opisano.52 Uvjeti gradijenta bili su u biti isti kao što je opisano u izvornoj publikaciji,52 osim što je korišten Nycodenz umjesto metrizamida.
Liječenje Gal-3–inhibitorom i proteinazom K
Lizati izcistinozin-GFP MDCK stanice i 293T koje eksprimiraju Gal-3–GFP i CTNS-DsRed ili Gal-3–GFP i MCP-1–DsRed inkubirane su sa ili bez 5 mM tiodigalaktozida ili 5 mM N -Acetil-D-laktozamin, odnosno 2 inhibitora Gal-3 CRD. Nakon 30 minuta inkubacije na 4 - C uz stalno mućkanje, lizati su inkubirani s 50 ml anti-GFP mikrozrnaca, a imunoprecipitacija je izvedena kao što je prethodno spomenuto. Istaloženi proteini su odvojeni pomoću SDS-PAGE na 10 postotnom gelu.
Lizati izcistinozin-GFP MDCK stanice i frakcije obogaćene lizosomima mišje jetre inkubirane su sa ili bez 2 posto Triton X-100 10 minuta na 4 - C, a zatim su inkubirane 30 minuta sa ili bez 2,5 mg/ml i 25 mg /ml proteinaze K, respektivno. Nakon inaktivacije enzima s 1 mM fenilmetilsulfonil fluorida tijekom 5 minuta na 4 - C, proteini su odvojeni pomoću SDS-PAGE na 10 postotnom gelu.
Imunofluorescentna analiza
Fiksne MDCK stanice su inkubirane s anti-Lamp-2 (OriGeneTechnologies, Rockville, MD) i anti-Gal-3 antitijelima (CedarlaneLaboratories, Burlington, Ontario, Kanada) 2 sata na sobnoj temperaturi, nakon čega je inkubirana Alexa Fluor 555 sekundarnih antitijela (Invitrogen, Carlsbad, CA) 1 sat na sobnoj temperaturi. Konfokalne slike snimljene su mikroskopom Zeiss LSM 700 (Carl ZeissMicroscopy, Jena, Njemačka).
293T stanice koje prolazno eksprimiraju samo Gal-3–GFP, Gal-3–GFP i DsRed ili Gal-3–GFP icistinozin-DsRed uzgojene su na pokrovnom stakalcu prije postavljanja na stakalce. Stanice su snimljene pomoću instrumenta Keyence BZ-X700 (Keyence Corp., Osaka, Japan).
Popravljenobubregsekcije su inkubirane preko noći na 4 - C s anti-CD68 (BioLegend, San Diego, CA) ili anti-Gal-3 antitijelima (BioLegend), nakon čega je slijedilo sekundarno antitijelo Alexa Fluor 488 (Invitrogen), 1 sat na sobnoj temperaturi. Slike su snimljene instrumentom Keyence BZ-X700. Kvantifikacija ekspresije CD68 opisana je u Dodatnim metodama.
MEF-ovi koji eksprimiraju Gal-3-GFP obojeni su pomoću anti-Hsc70 antitijela (Enzo Life Sciences, Farmingdale, NY) i snimljeni kao što je prethodno opisano.53
Totalna unutarnja refleksija FL fluorescentna mikroskopija
WT i Ctns–/–MEF koji eksprimira Gal-3–GFP i CTNS-DsRed nasađeni su na borosilikatnu zdjelu s 4-komorom 35- mm (Cellvis, Mountain View, CA). Nakon 2 dana u kulturi, MEF-ovi su analizirani FL fluorescentnom mikroskopijom totalne unutarnje refleksije kao što je prethodno opisano54i u Dopunskim metodama. Slike su analizirane pomoću softvera ImageJ.
Gal-3 analiza izraza
293T stanice koje eksprimiraju Gal-3–GFP, Gal-3–GFP i DsRed ili Gal-3–GFP i CTNS-DsRed i eksplantiranebubregasu lizirani u puferu za ispitivanje radioimunoprecipitacije koji sadrži koktel inhibitora proteinaze. Proteini su odvojeni na 4-postotnom do 15-postotnom gelu i otkriveni pomoću anti-Gal-3 (Abcam, Cambridge, UK) ili anti-gliceraldehid-3-fosfat dehidrogenaze (Cell Signaling Technology, Danvers, MA) antitijela .
Bubrezisu homogenizirani u RLT puferu koji sadrži b-merkaptoetanol korištenjem Precellys 24 (Bertin Instruments, Montigny-le-Bretonneux, Francuska). Izolirana je RNA i izvedena je lančana reakcija digitalne polimeraze specifična za Gal-3 kao što je opisano u Dopunskim metodama. Ekspresija Gal-3 transkripta izražena je kao omjer u usporedbi s endogenom kontrolom 18S. Imunoenzimski test (Abcam) korišten je za otkrivanje razine Gal-3 u serumima miševa i ljudi, prema uputama proizvođača.
Funkcija bubrega
Razine fosfata u serumu i urinu, kreatinina u serumu i uree procijenjene su korištenjem kompleta QuantiChrom Phosphate Assay Kit, Quanti Chrom Creatinine Kit i QuantiChrom urea Assay Kit (BioassaySystems, Hayward, CA). Razine proteina u urinu mjerene su pomoću Pierce BCA Protein Assay Kit (Rockford, IL).
Histologija
U vrijeme kada su miševi ubijeni,bubregaprikupljeni su, fiksirani u formalinu i uklopljeni u parafin. Sekcije obojene hematoksilinom i eozinom pregledala je na slijepi način dr. Marie Claire Gubler kako je opisano u Dopunskim metodama.
Mjerenje sadržaja cistina
Mjerenje cistina u tkivu provedeno je masenom spektrometrijom (LC-ESI-MS/MS) kako je prethodno opisano.39
Standardna nefrektomija i lažna operacija
KBB kod miševa izazvan je standardnom operacijom nefrektomije 2-faze međuzbroja kao što je prethodno opisano.55,56Lažna skupina miševa podvrgnuta je istom postupku, ali bez rezanjabubregtkivo.
Razina citokina u serumu
Za mjerenje razine citokina u mišjem serumu, mišupalaniz citometrijskih kuglica (BD Biosciences, San Jose, CA) izveden je prema uputama proizvođača. Koncentracija MCP-1 u ljudskom serumu određena je pomoću enzimskog imunološkog testa usmjerenog protiv MCP-1 (Abcam, Cambridge, UK) prema uputama proizvođača.
Statistička analiza
Vrijednosti su izražene kao srednje vrijednosti - SEM. Značajnost rezultata procijenjena je neuparenim 2-tailed t-testom ili neuparenim 2-tailed t-testom s Welchovom korekcijom. Grupne usporedbe 3 ili više uvjeta napravljene su parametarskom analizom varijance, nakon čega je uslijedio Tukey test višestrukih usporedbi za usporedbe u paru. Histološki rezultati uspoređeni su pomoću Mann-Whitney testa. Analize su provedene pomoću softvera Prism 6 (GraphPad, San Diego, CA). P-vrijednost manja od 0.05 smatrana je značajnom.
Odobrenje studije
Pokusi na miševima provedeni su u skladu s protokolima Institucionalnog odbora za korištenje životinja. Korištenje ljudskog tkiva u ovoj studiji odobrio je Sveučilište Kalifornije, San Diego, HumanResearch Protections Program.
RAZOTKRIVANJE
SC je član Znanstvenog odbora i član Upravnog odboracistinozaZaklada za istraživanje. SC je suosnivač, dioničar i član znanstvenog i upravnog odbora GenStem TherapeuticsInc. Uvjete ovog sporazuma pregledalo je i odobrilo Sveučilište Kalifornije – San Diego u skladu sa svojim politikama o sukobu interesa. Svi ostali autori izjavili su da nemaju suprotstavljenih interesa.
pružanje Gal-3–/–miševi. Zahvaljujemo Lou Devanneauxu i NicholeFlerchingeru na njihovoj tehničkoj pomoći i Elizabeth Souter na recenziji rukopisa. Zahvaljujemo Christopheru Alfonsu iz BDBioscience na osiguranju mišaupalanizu citometrijskih kuglica i za njegovu pomoć u tumačenju rezultata. Ovaj rad su podržali grantovi Nacionalnog instituta za zdravlje RO1-DK090058 i R01-DK110162,CistinozaResearch Foundation i Kalifornijski institut za regenerativnu medicinu (CIRM, CLIN-09230). TL podržava stipendija za postdiplomske studije Vaincre Les MaladiesLysosomales. AB i JZ podržani su stipendijom odcistinozaZaklada za istraživanje. UCSD Neuroscience MicroscopyShared Facility financirao je grant P30-NS047101 Nacionalnog instituta za neurološke poremećaje i moždani udar (NINDS).
REFERENCE
1. Medzhitov R. Porijeklo i fiziološke ulogeupala. Priroda. 2008;454:428-435.
2. Donath MY. Ciljanjeupalau liječenju dijabetesa tipa 2. Dijabetes Obes Metab. 2013;15(dodatak 3):193–196.
3. Jaffer U, Wade RG, Gourlay T. Citokini u sindromu sistemskog inflamatornog odgovora: pregled. HSR Proc Intenzivna njega Cardiovasc anestezija. 2010;2:161-175.
4. Pecoits-Filho R, Heimburger O, Barany P, et al. Povezanosti između cirkulirajućih upalnih markera i rezidualne bubrežne funkcije u bolesnika s CRF-om. Ja sam JBubregDis. 2003;41:1212-1218.
5. Gahl WA, Thoene JG, Schneider JA.Cistinoza. N Engl J Med. 2002;347: 111–121.
6.Cherqui S, Kalatzis V, Trugnan G, Antignac C. The targeting ofcistinozinna lizosomsku membranu zahtijeva signal temeljen na tirozinu i novi motiv razvrstavanja. J Biol Chem. 2001;276:13314-13321.
7. Kalatzis V, Cherqui S, Antignac C, Gasnier B.Cistinozin, protein s nedostatkomcistinoza, je H()-pokretan lizosomski transporter cistina. EMBO J. 2001;20:5940–5949.
8. Cherqui S, Courtoy PJ. Bubrežni Fanconijev sindrom ucistinoza: patogenetski uvidi i terapijske perspektive. Nat Rev Nephrol. 2017;13:115-131.
9. Nesterova G, Gahl W. Nefropatskicistinoza: kasne komplikacije multisistemske bolesti. Pediatr Nephrol. 2008;23:863–878.
10. Cherqui S, Sevin C, Hamard G, et al. Nedostaje intralizosomsko nakupljanje cistina u miševacistinozin, protein s nedostatkomcistinoza. Mol Cell Biol. 2002;22:7622-7632.
11. Nevo N, Chol M, Bailleux A, et al. Bubrežni fenotipcistinozamodel miša ovisi o genetskoj pozadini. Nephrol dijal transplantacija. 2010;25:1059-1066.
12. Kalatzis V, Serratrice N, Hippert C, et al. Očne anomalije u acistinozaživotinjski model oponaša patogenezu bolesti. Pediatr Res. 2007;62:156-162.
13. Vodič Chevronnay HP, Janssens V, Van Der Smissen P, et al. Mišji model sugerira dva mehanizma za promjene štitnjače u dojenčadicistinoza: smanjena sinteza tireoglobulina zbog stresa endoplazmatskog retikuluma/odgovora nesmotanog proteina i poremećene lizosomske obrade. Endokrinologija. 2015;156:2349-2362.
14. Brodin-Sartorius A, Tete MJ, Niaudet P, et al. Terapija cisteaminom odgađa napredovanje nefropatijecistinozau kasnih adolescenata i odraslih.BubregInt. 2012;81:179-189.
15. Cherqui S. Terapija cisteaminom: liječenje zacistinoza, a ne lijek.BubregInt. 2012;81:127-129.
16. Gahl WA, Balog JZ, Kleta R. Nephropathiccistinozau odraslih: prirodna povijest i učinci oralne terapije cisteaminom. Ann Intern Med. 2007;147:242-250.
17. Cherqui S, Courtoy PJ. Bubrežni Fanconijev sindrom ucistinoza: patogenetski uvidi i terapijske perspektive. Nat Rev Nephrol. 2017;13:115-131.
18. Napolitano G, Johnson JL, He J, et al. Oštećenje autofagije posredovane šaperonom dovodi do selektivnih defekata lizosomske degradacije u lizosomskoj bolesti nakupljanjacistinoza. EMBO Mol Med. 2015;7:158-174.
19. Andrzejewska Z, Nevo N, Thomas L, et al.Cistinozinje komponenta vakuolarnog kompleksa H-ATPaza-regulator-rag koji kontrolira cilj signalizacije rapamicinskog kompleksa 1 kod sisavaca. J Am Soc Nephrol. 2016; 27: 1678–1688.
20. Rega LR, Polishchuk E, Montefusco S, et al. Aktivacija transkripcijskog faktora EB spašava lizosomske abnormalnosti u cistinoticibubregStanice.BubregInt. 2016;89:862–873.
21. Dumić J, Dabelić S, Flogel M. Galectin-3: priča otvorenog kraja. Biochim Biophys Acta. 2006;1760:616-635.
22. Sciacchitano S, Lavra L, Morgante A, et al. Galektin-3: jedna molekula za abecedu bolesti, od A do Z. Int J Mol Sci. 2018; 19 (2).
23. Calvier L, Martinez-Martinez E, Miana M, et al. Utjecaj inhibicije galektina-3 na srčane i bubrežne ozljede izazvane aldosteronom. JACC Heart Fail. 2015;3:59-67.
24. Frenay AR, Yu L, van der Velde AR, et al. Farmakološka inhibicija galektina-3 štiti od hipertenzivne nefropatije. Am J Physiol Renal Physiol. 2015;308:F500-F509.
25. Kolatsi-Joannou M, Price KL, Winyard PJ, Long DA. Modificirani citrusni pektin smanjuje ekspresiju galektina-3 i težinu bolesti u eksperimentalnoj akutnojbubregozljeda. PloS jedan. 2011;6:e18683.
26. Martinez-Martinez E, Ibarrola J, Clavier L, et al. Blokada galektina-3 smanjuje bubrežnu fibrozu u dva normotenzivna eksperimentalna modela oštećenja bubrega. PloS jedan. 2016;11:e0166272.
27. Nevo N, Thomas L, Chhuon C, et al. Utjecajcistinozaglikozilacija na stabilnost proteina pomoću diferencijalnog dinamičkog označavanja stabilnog izotopa aminokiselinama u staničnoj kulturi (SILAC). Mol stanična proteomika. 2017;16:457-468.
28. Napolitano G, Johnson JL, He J, et al. Oštećenje autofagije posredovane šaperonom dovodi do selektivnih defekata lizosomske degradacije u lizosomskoj bolesti nakupljanjacistinoza. EMBO Mol Med. 2015;7:158-174.
29. Majeski AE, Dice JF. Mehanizmi autofagije posredovane šaperonom. Int J Biochem Cell Biol. 2004;36:2435-2444.
30. Xie W, Zhang L, Jiao H, et al. autofagija posredovana šaperonom sprječava apoptozu razgradnjom BBC3/PUMA. Autofagija. 2015;11:1623-1635.
31. Li X, Ma Q, Wang J, et al. c-Abl i Arg tirozin kinaze reguliraju lizosomsku razgradnju onkoproteina Galektina-3. Stanična smrt Differ. 2010;17:1277-1287.
32. Takeuchi H, Tanaka M, Tanaka A, et al. Dominacija M2-polariziranih makrofaga u raku mokraćnog mjehura utječe na angiogenezu, stupanj tumora i invazivnost. Oncol Lett. 2016;11:3403-3408.
33.Chavez-Galan L, Olleros ML, Vesin D, Garcia I. Mnogo više od M1 i M2 makrofaga, postoje i CD169( ) i TCR( ) makrofagi. Front Immunol. 2015;6:263.
34. Henderson NC, Sethi T. Regulacijaupalaod galectina-3. Immunologic Rev. 2009;230:160-171.
35. Deshmane SL, Kremlev S, Amini S, Sawaya BE. Monocitni kemoatraktantni protein-1 (MCP-1): pregled. J Interferon Cytokine Res. 2009;29:313-326.
36. Skowyra ML, Schlesinger PH, Naismith TV, Hanson PI. Pokrenuto regrutiranje ESCRT strojeva potiče endolizosomski popravak. Znanost. 2018;360(6384).
37. MacKinnon AC, Farnworth SL, Hodkinson PS, et al. Regulacija alternativne aktivacije makrofaga galektinom-3. J Immunol. 2008; 180: 2650-2658.
38. Sano H, Hsu DK, Yu L, et al. Ljudski galektin-3 je novi kemoatraktant za monocite i makrofage. J Immunol. 2000;165:2156-2164.


